ヒトゲノムの8%は
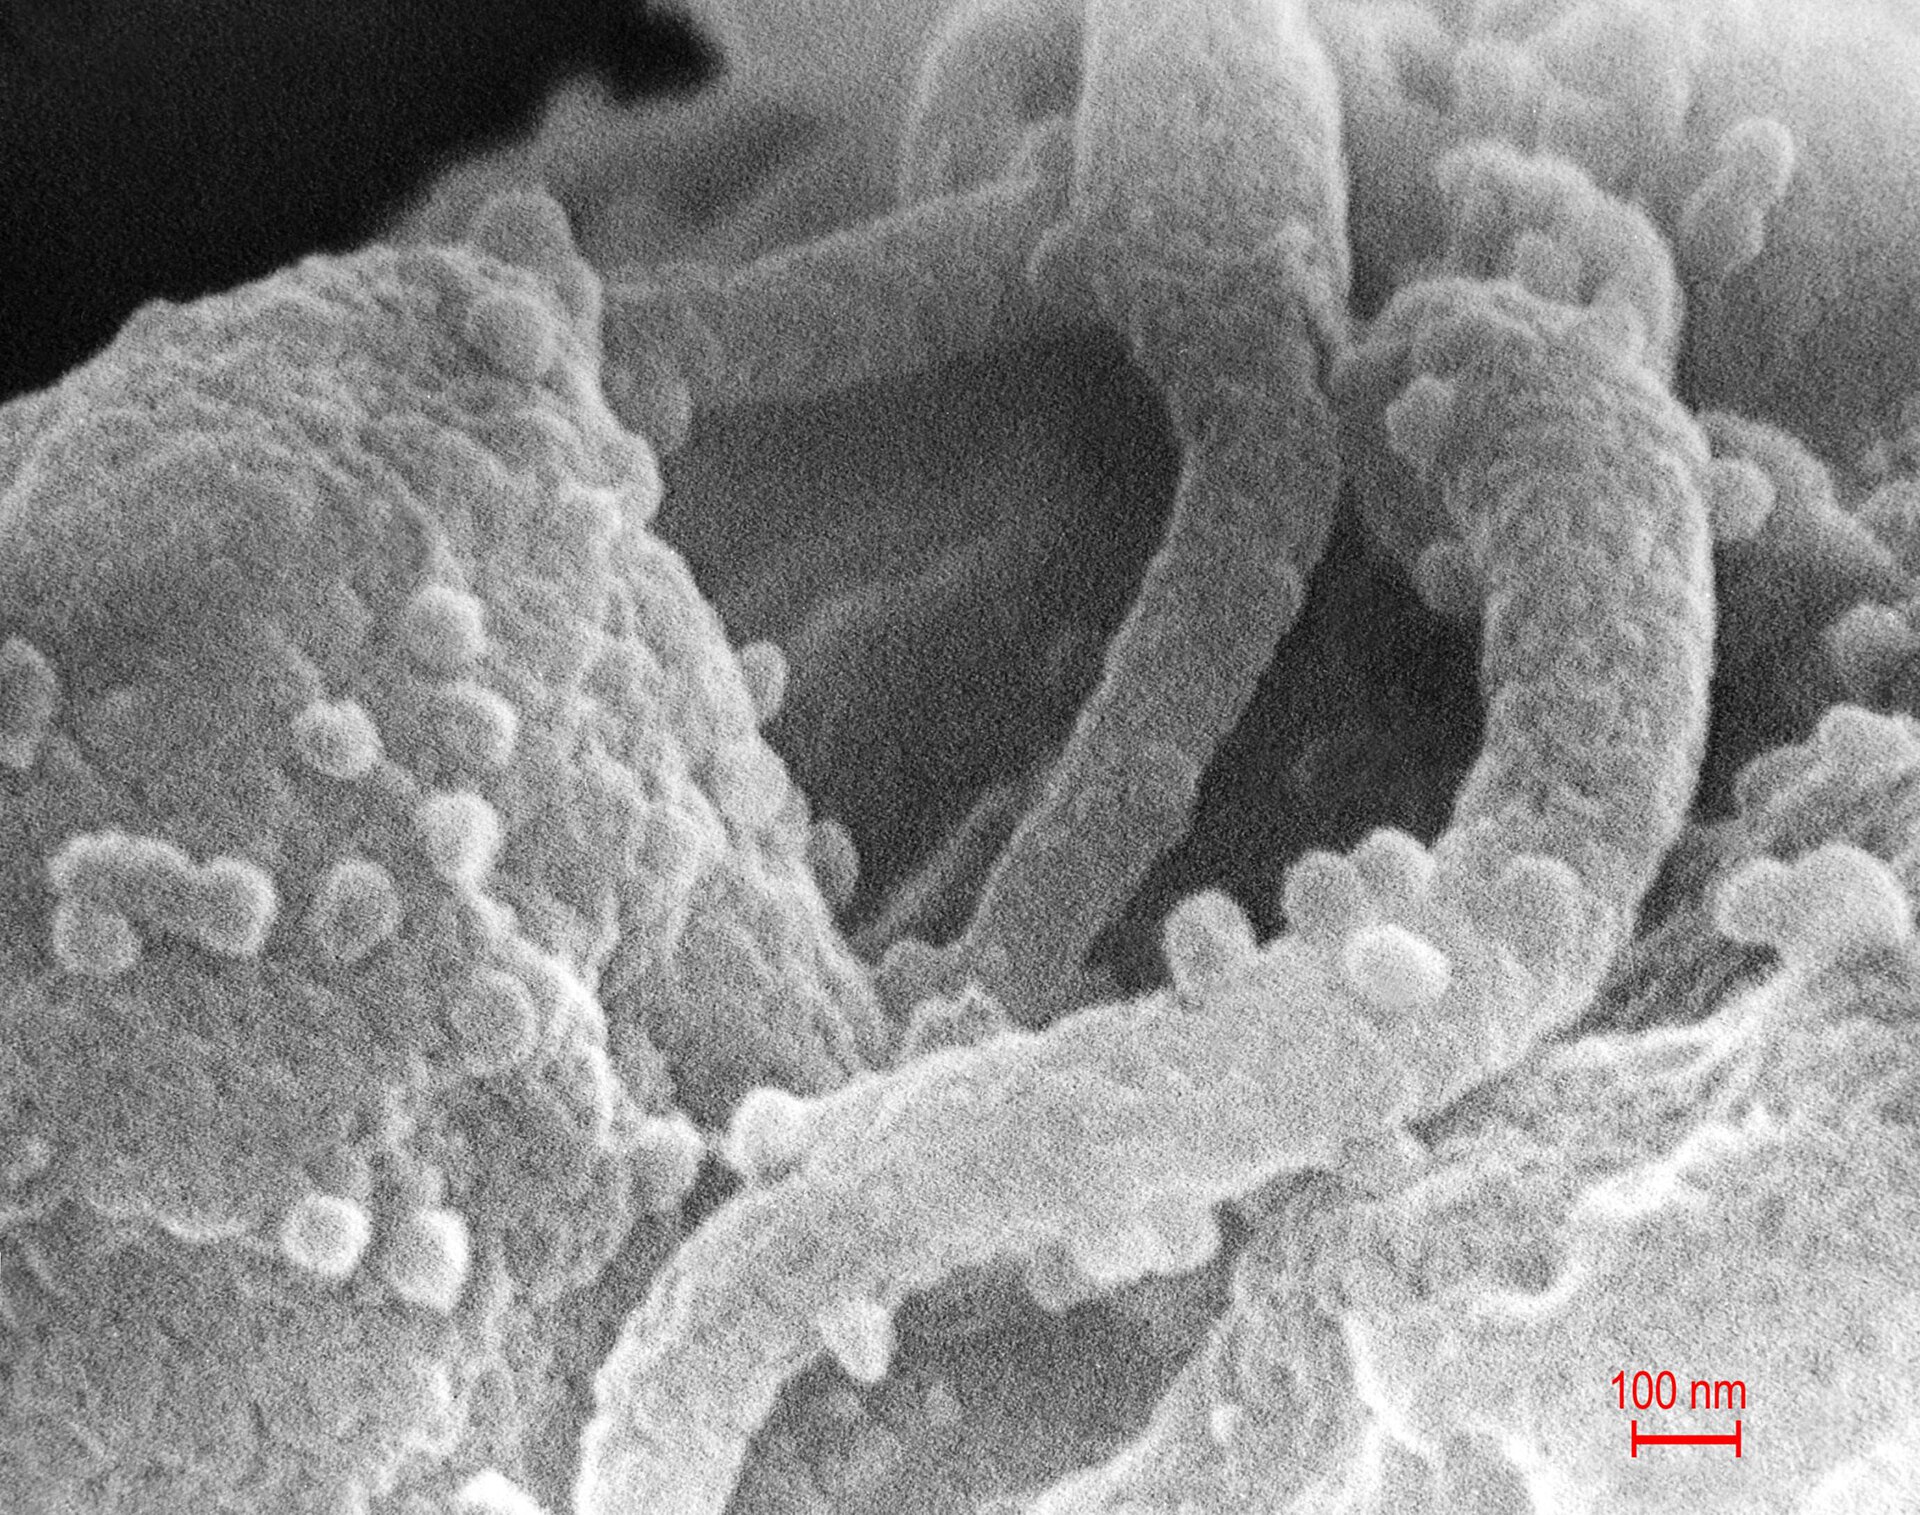
祖先の卵や精子に入り込んだウイルスの遺伝子が、いまも私たちの染色体に並び、その一部は胎盤を作る仕事をしている。
CDC / C. Goldsmith ほか / Wikimedia Commons / パブリックドメイン
文書の概要
ヒトのDNAには、かつてレトロウイルスが書き込んだ配列が大量に残っている。2001年のヒトゲノム解読で、この種の配列はゲノムのおよそ8%を占めると見積もられた。タンパク質の設計図にあたる部分が約1%なので、それより何倍も多い。大半は壊れて働かないが、2000年には、そのうちの一つの遺伝子が胎盤の細胞を融合させる「シンシチン」として働いていることが分かった。なぜこれほど多くが残り、どれだけが今も役に立っているのかは、まだ数え切れていない。
この文書の三つの謎
- ウイルスの配列は、なぜ消されずにゲノムの8%も残ったのか
- 壊れた配列のうち、どれだけが今も体の役に立っているのか
- 眠っているウイルスが、病気に関わることはあるのか
- 成立
- 数千万年前から、チンパンジーと分かれた後まで続いた感染の積み重ね
- 言語
- DNAの4文字。両端のLTRと、gag・pol・envという遺伝子の並び
- 所蔵
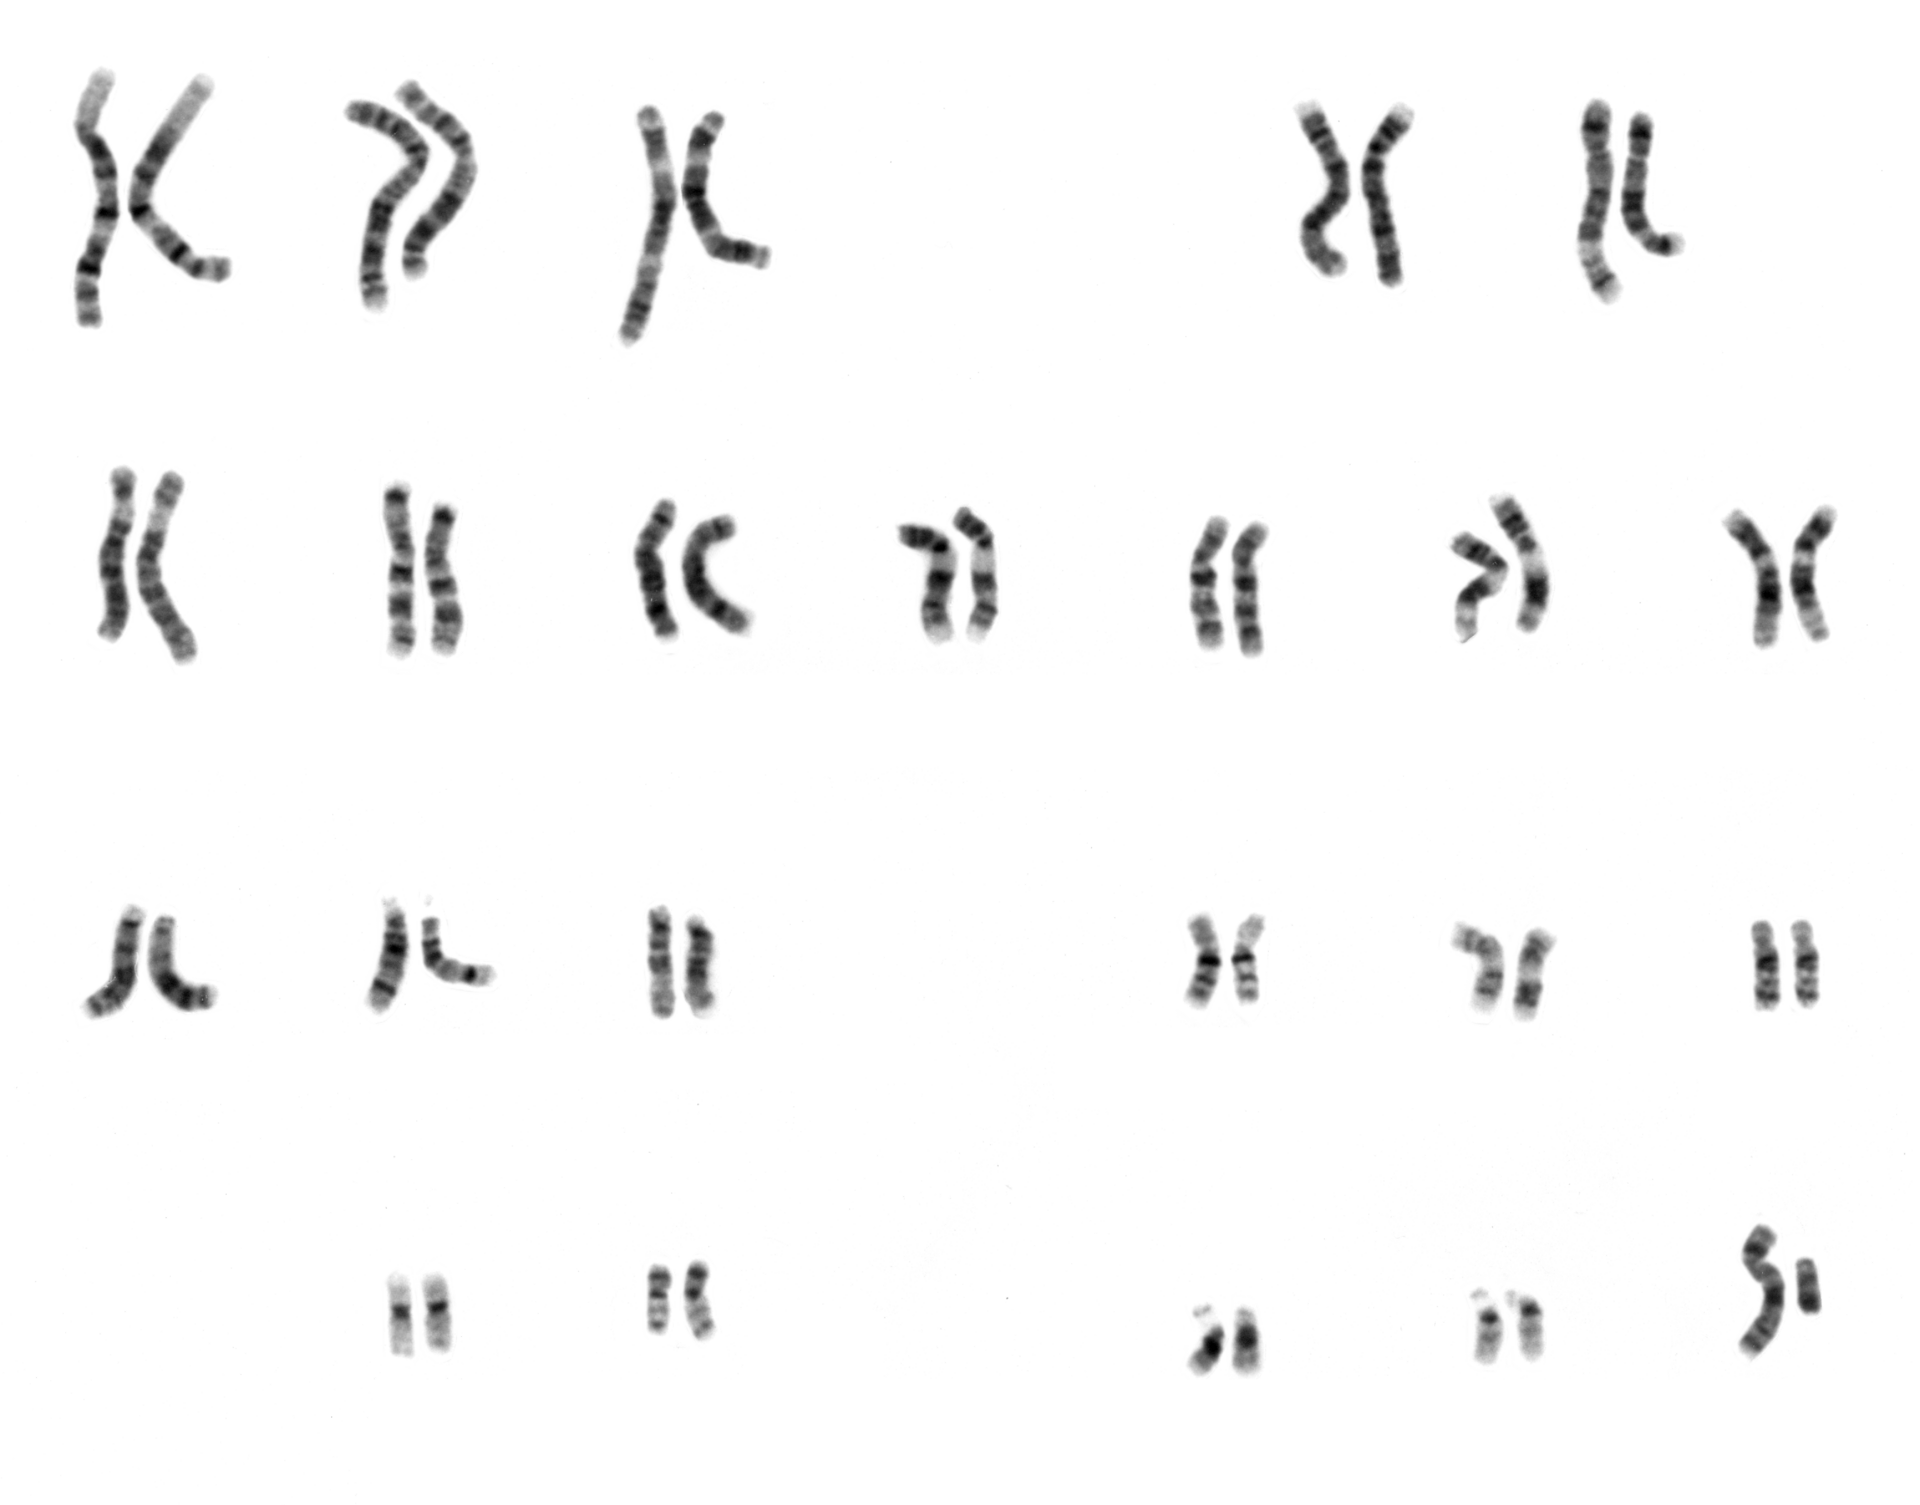
- ヒトのすべての細胞の染色体。チンパンジーやゴリラも同じ位置に多くを持つ
- 解読状況
- 胎盤のシンシチンなど一部の働きは確認。大半の役割は不明
確定している事実
数字の出どころと、争いのない観察だけを先に並べる。
2001年2月、国際ヒトゲノム計画の解析論文が『ネイチャー』に載った。その中で、両端に長い繰り返し配列(LTR)を持つ「LTR型レトロトランスポゾン」は、ゲノムの約8%と見積もられた。内在性レトロウイルス(ERV)はその主な中身である。
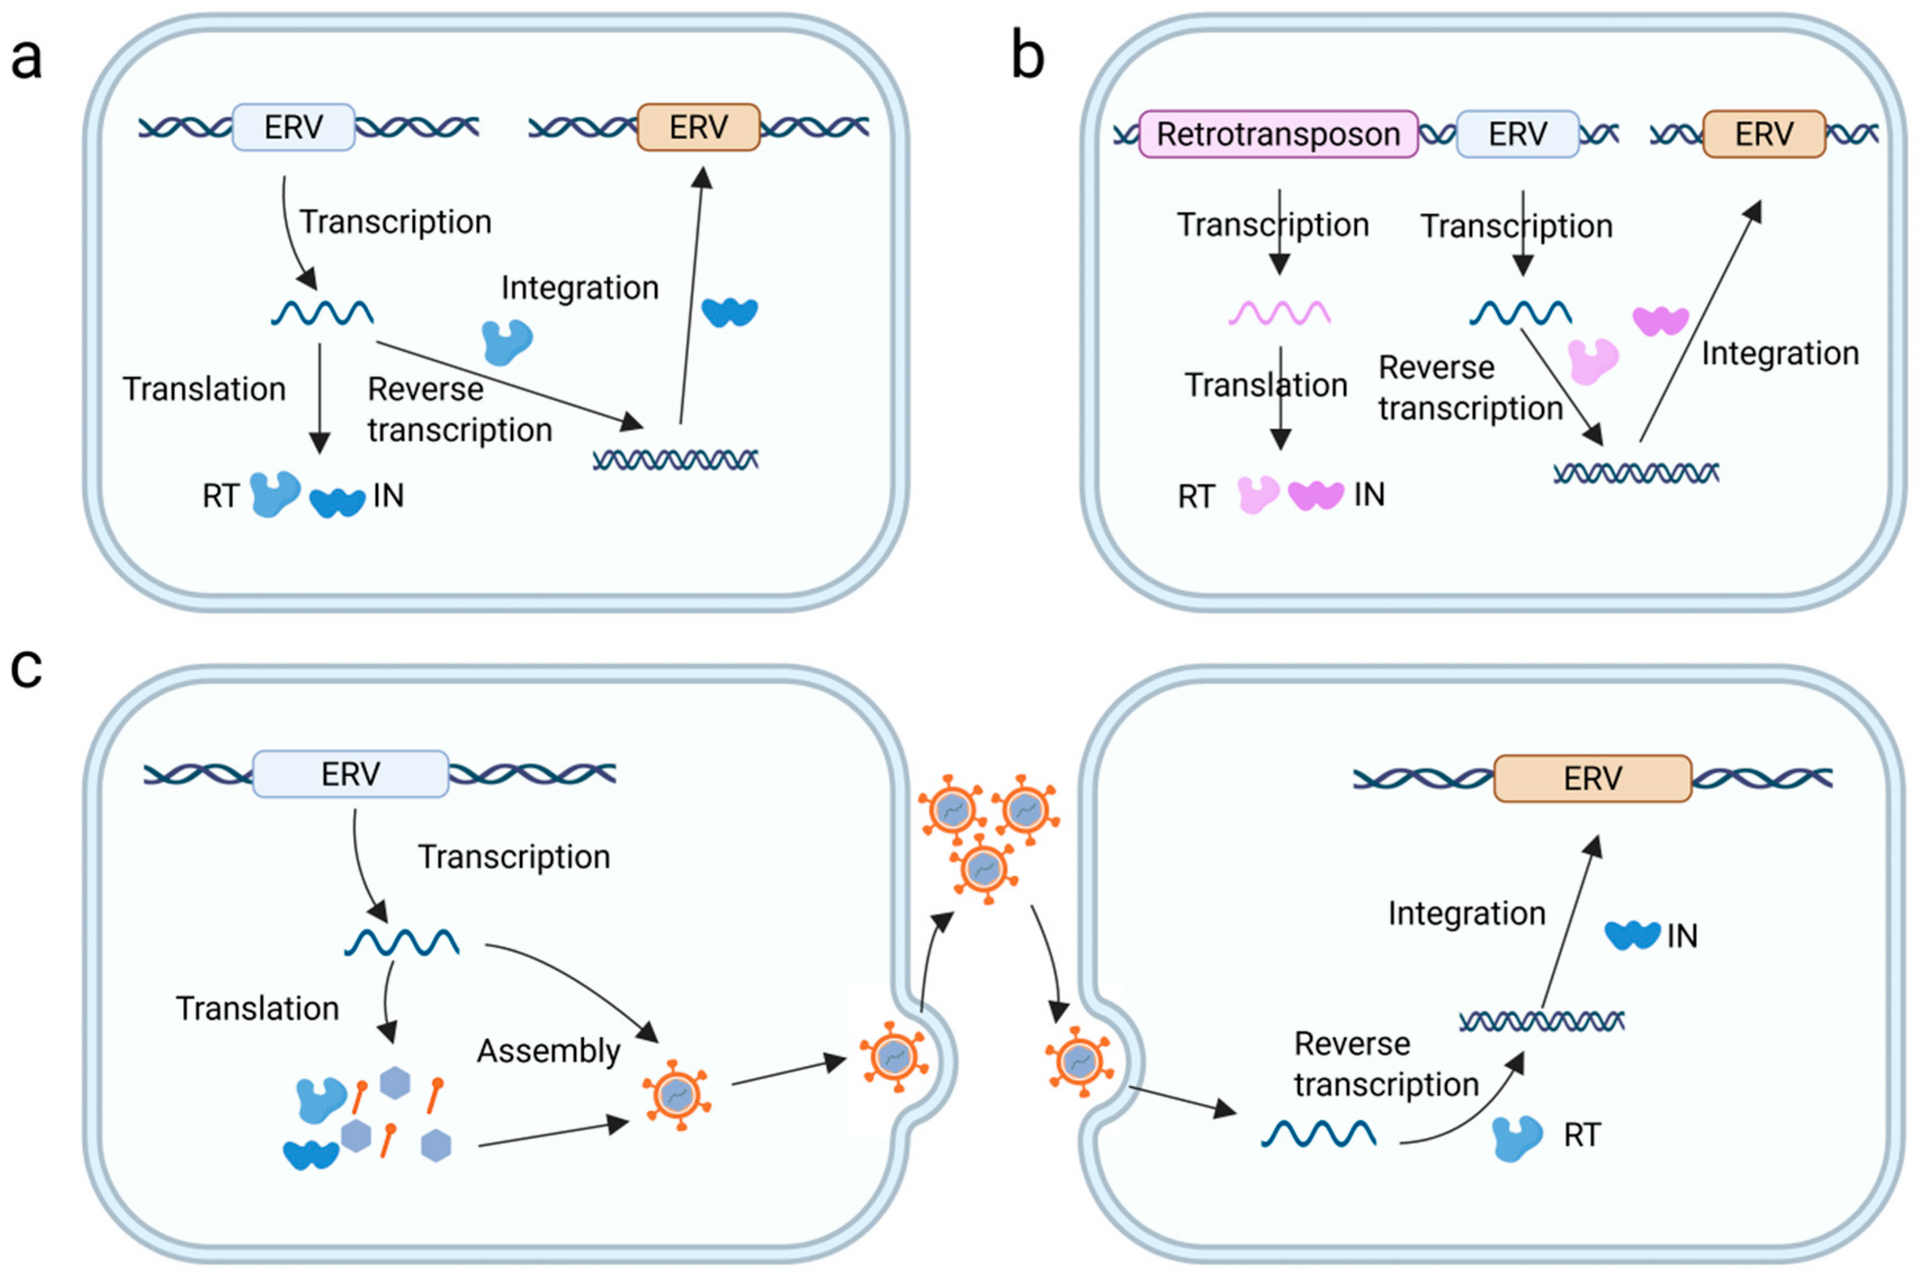
レトロウイルスは、自分のRNAをDNAに書き直して、感染した細胞の染色体に組み込む。組み込まれた先が卵や精子のもとになる細胞だと、その配列は子に受け継がれる。こうして親から子へ伝わるようになったものを「内在性」と呼ぶ。
- 量
- ゲノムの約8%。要素と断片はおよそ9万8000か所
- 比較
- タンパク質の設計図にあたる部分は約1%
- 仲間の数
- ヒトの内在性レトロウイルスは約30の系統に分けられる
- 受け継ぎ方
- 卵や精子を通じて、ほかの遺伝子と同じように親から子へ
原文・転記・訳
ゲノムに残ったウイルスを、一つの文書として読んでみる。
実物
ERVがゲノムの中で増える経路の模式図
書かれている並び
完全な形で残った場合の、左から右への順番
- LTR(左端の繰り返し。スイッチ役)
- gag(ウイルスの殻の材料)
- pol(逆転写酵素と組み込み酵素)
- env(細胞に取りつく表面のタンパク質)
- LTR(右端の繰り返し)
今の読み方
壊れた後にどう使われているか
- 多くは突然変異で読めなくなっている
- 両端のLTRどうしが組み換わり、LTRだけが残ったものが多い
- envが胎盤で細胞を融合させる遺伝子になった例がある
- LTRが近くの免疫遺伝子のスイッチになった例がある
- ほとんどの配列は、役割が調べられていない
ここから謎になる
壊れたはずの配列が、なぜ体の中で使われているのか。
ゲノムの中のウイルス配列は、ほとんどが変異で壊れ、ウイルスとしては働けない。ところが、その壊れた部品の一部が、宿主にとって欠かせない仕事を引き受けている。どの配列がそうなのかを一つずつ確かめる作業は、まだ途中にある。
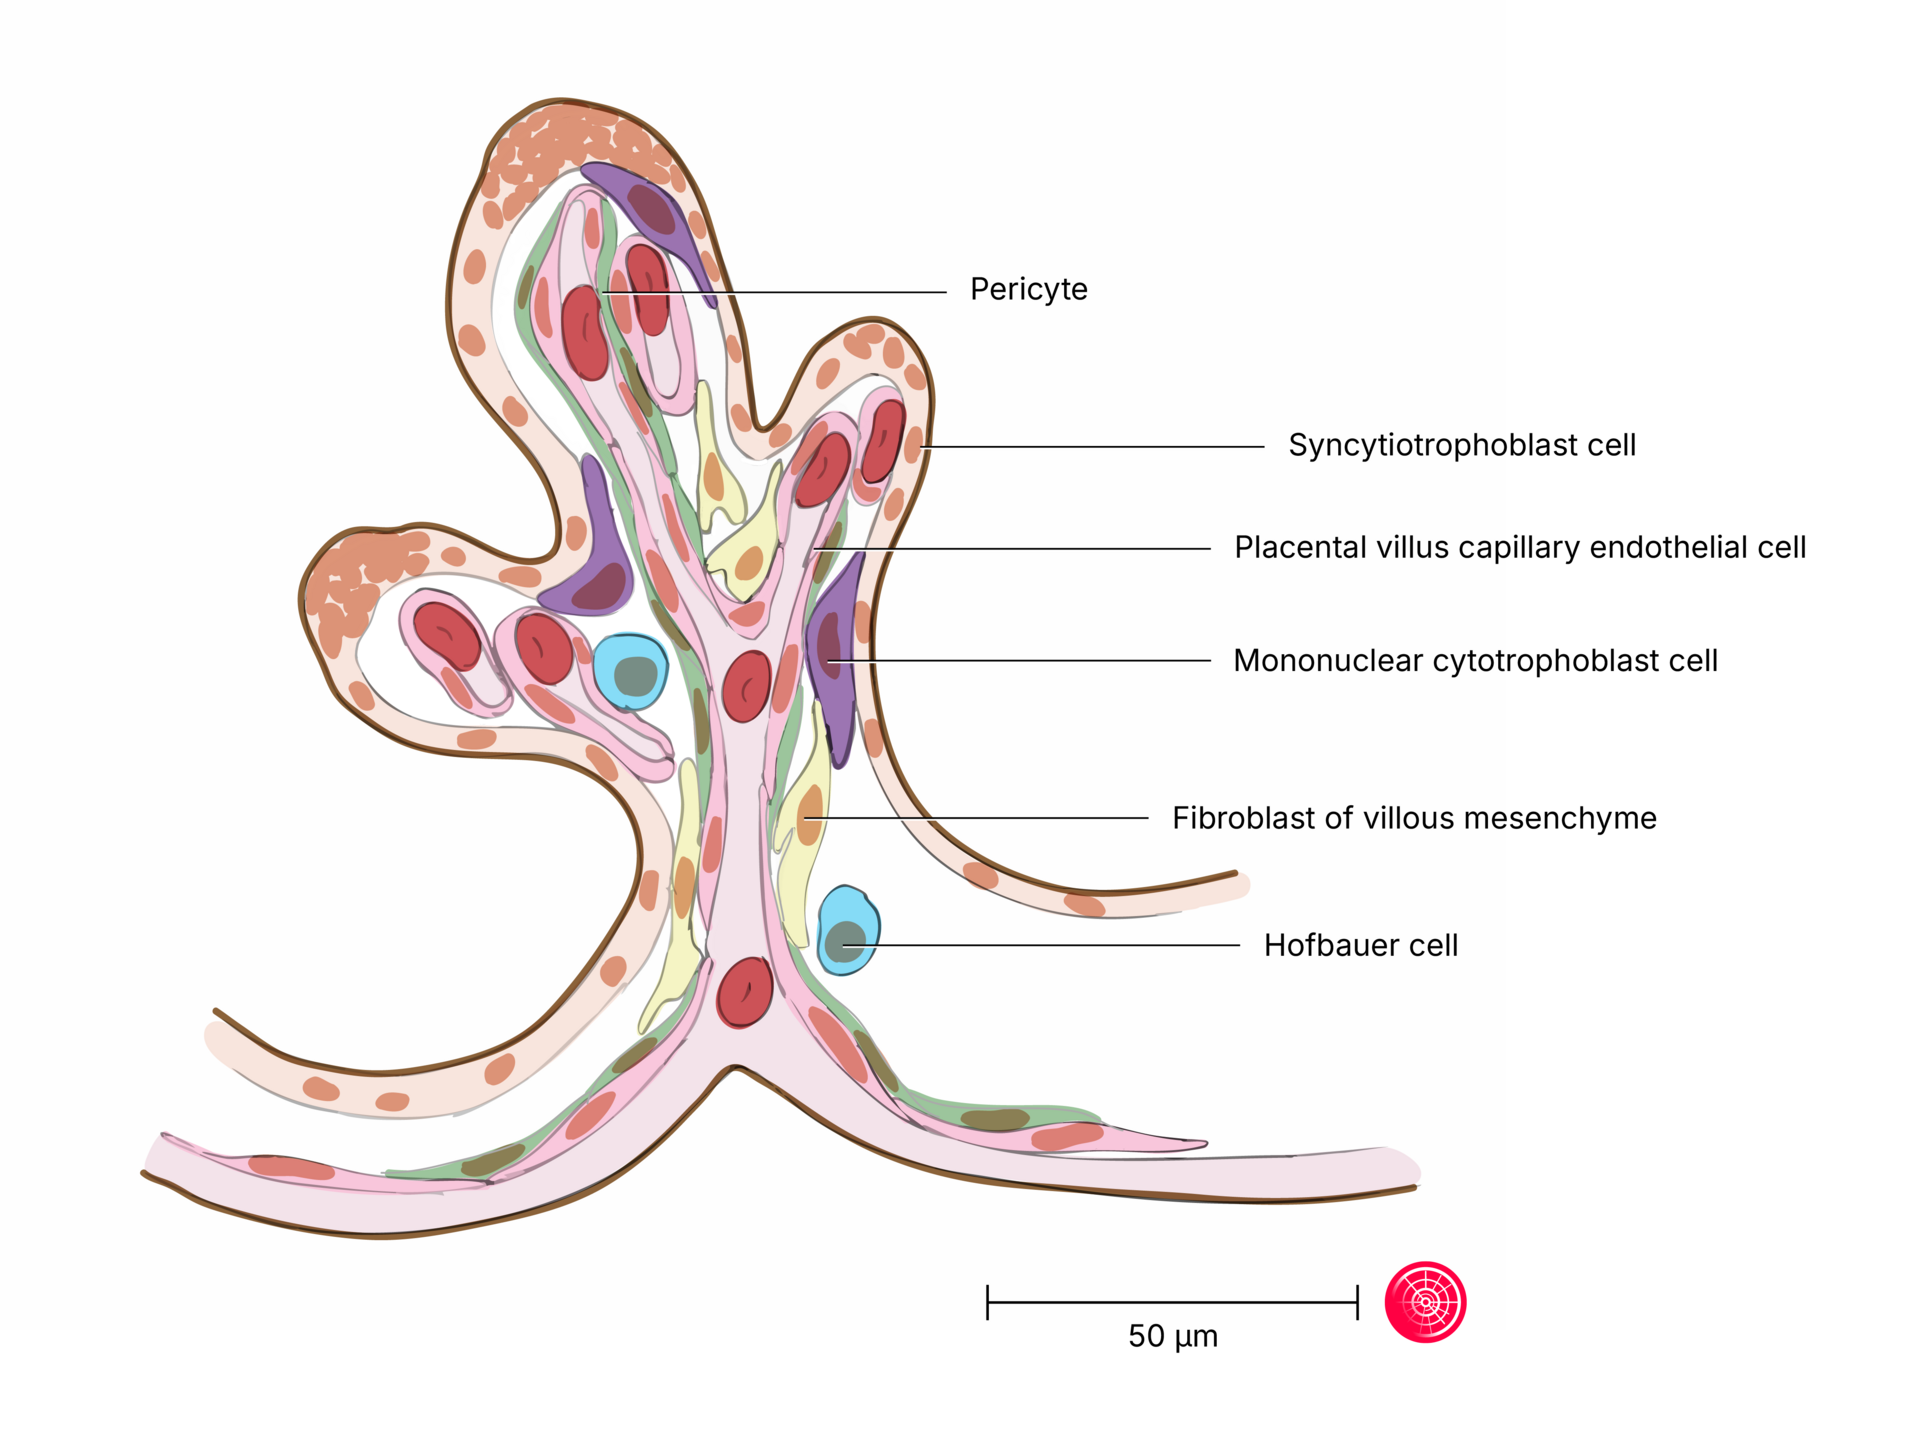
胎盤の部品
胎盤の絨毛の表面では、細胞どうしが融合して一枚の層(合胞体栄養膜)を作る。その融合を担う遺伝子の一つが、ウイルスのenv由来のシンシチンである。
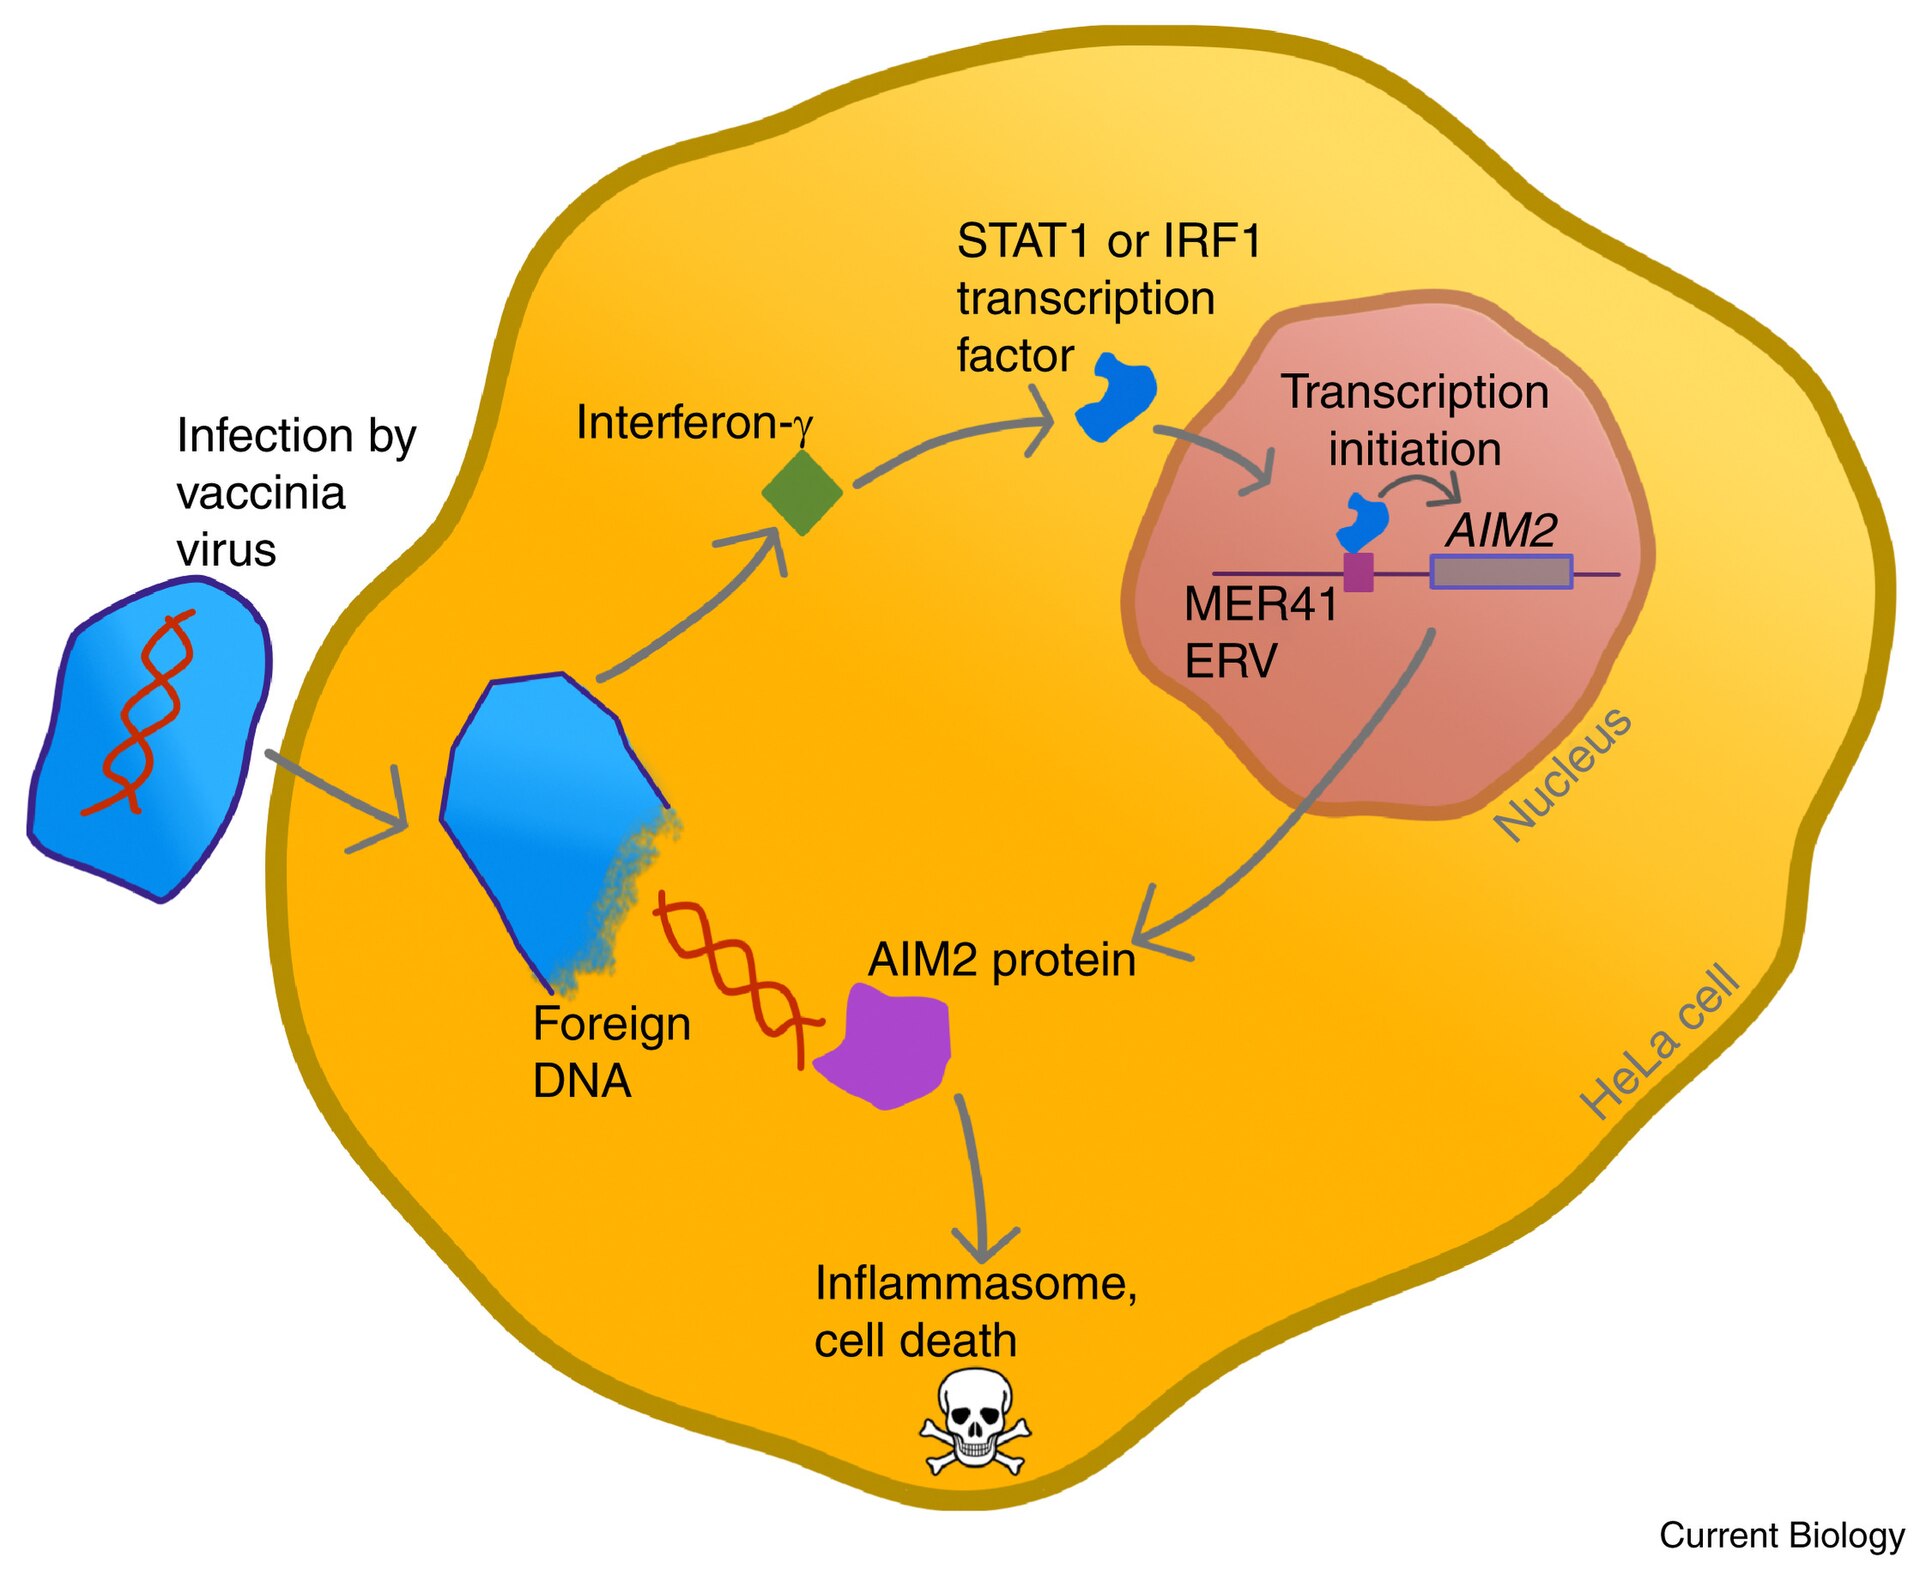
免疫のスイッチ
MER41というERVのLTRには、インターフェロンに反応するたんぱく質が結合する配列がある。これを削ると、近くのAIM2遺伝子が十分に働かなくなった。
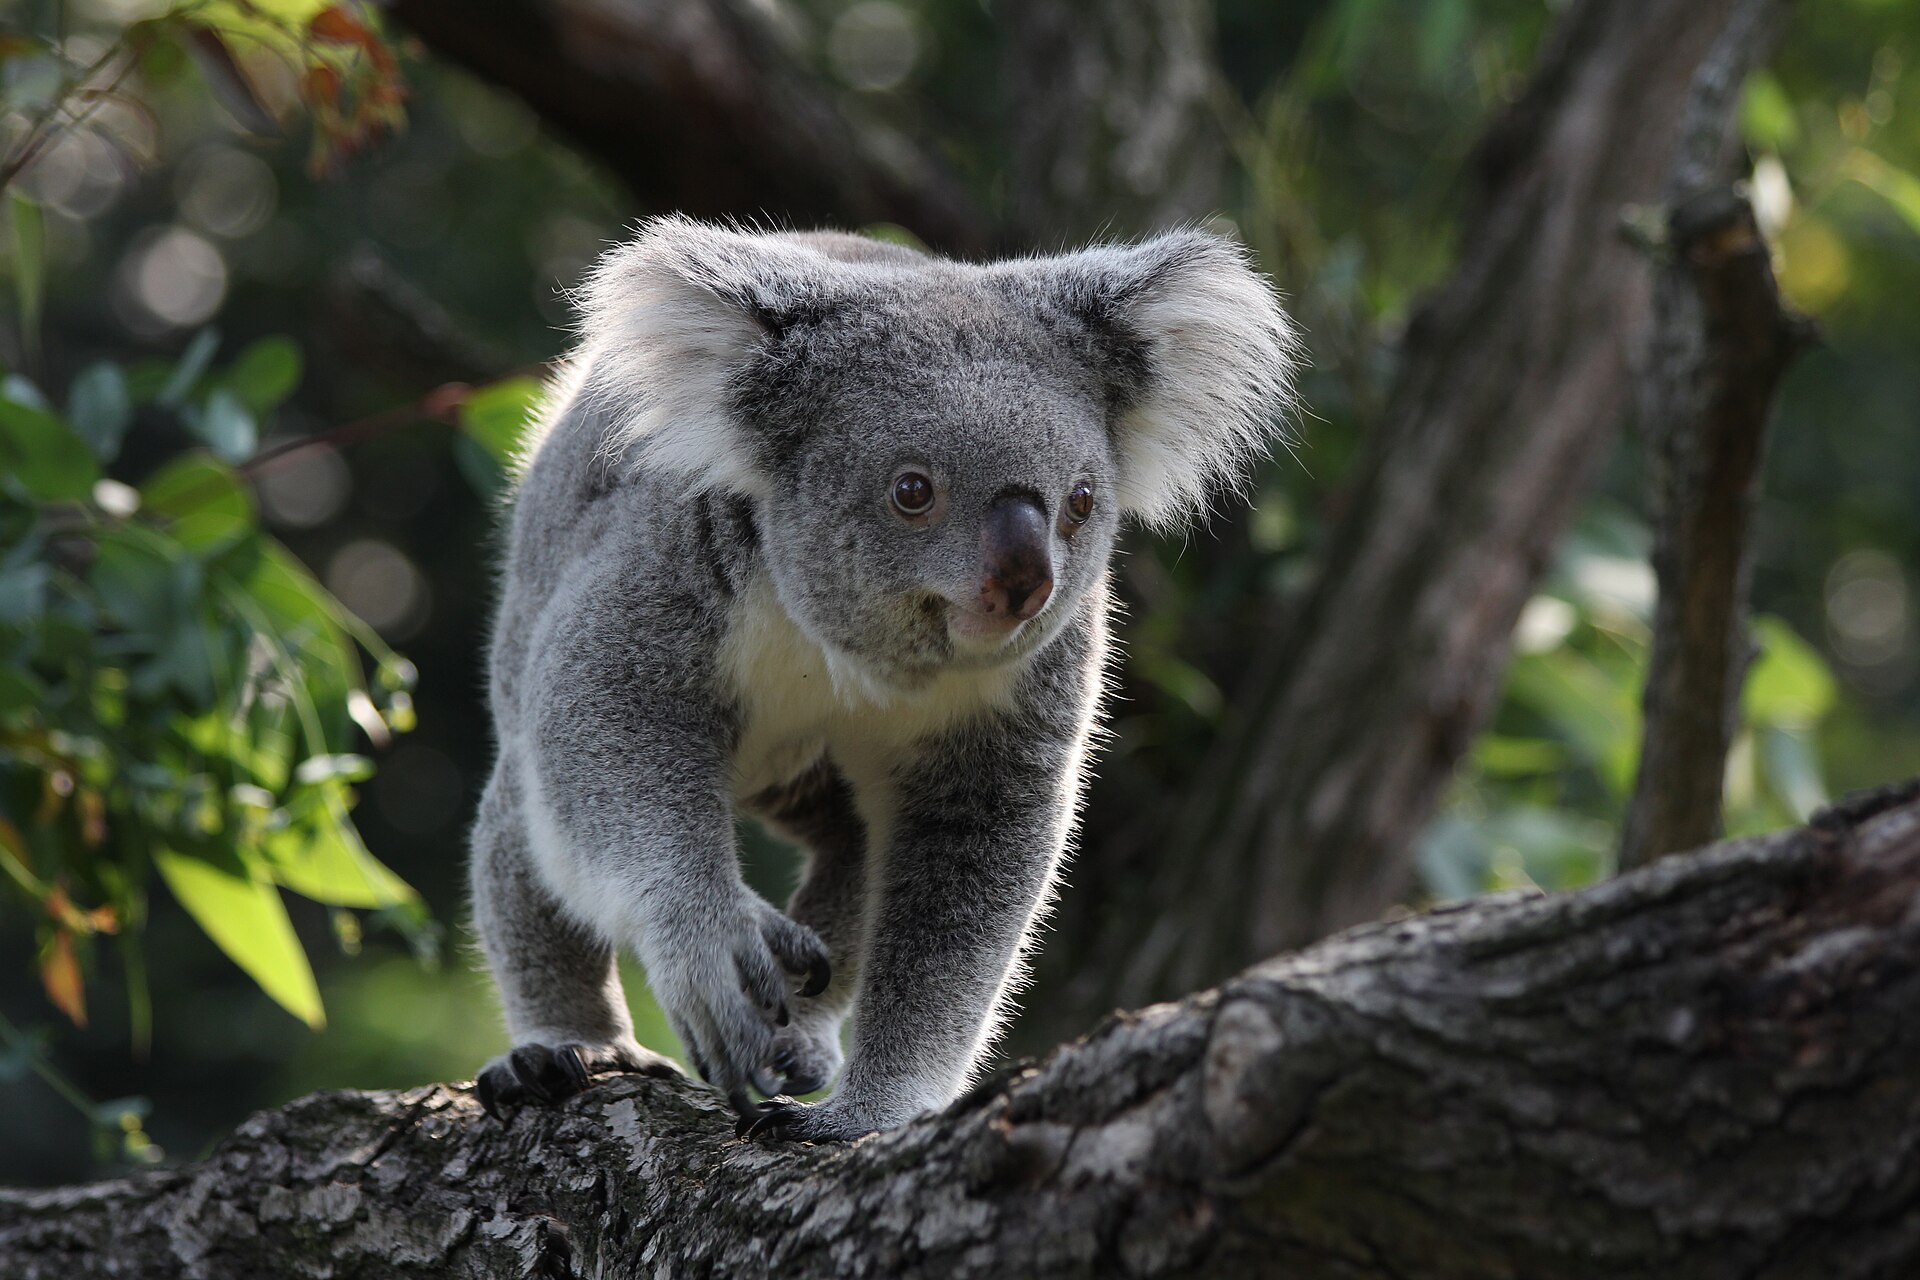
いま進んでいる感染
コアラでは、KoRVというレトロウイルスが今まさに卵や精子に入り込みつつある。まだ持っていない集団もあり、内在化の途中の姿として研究されている。
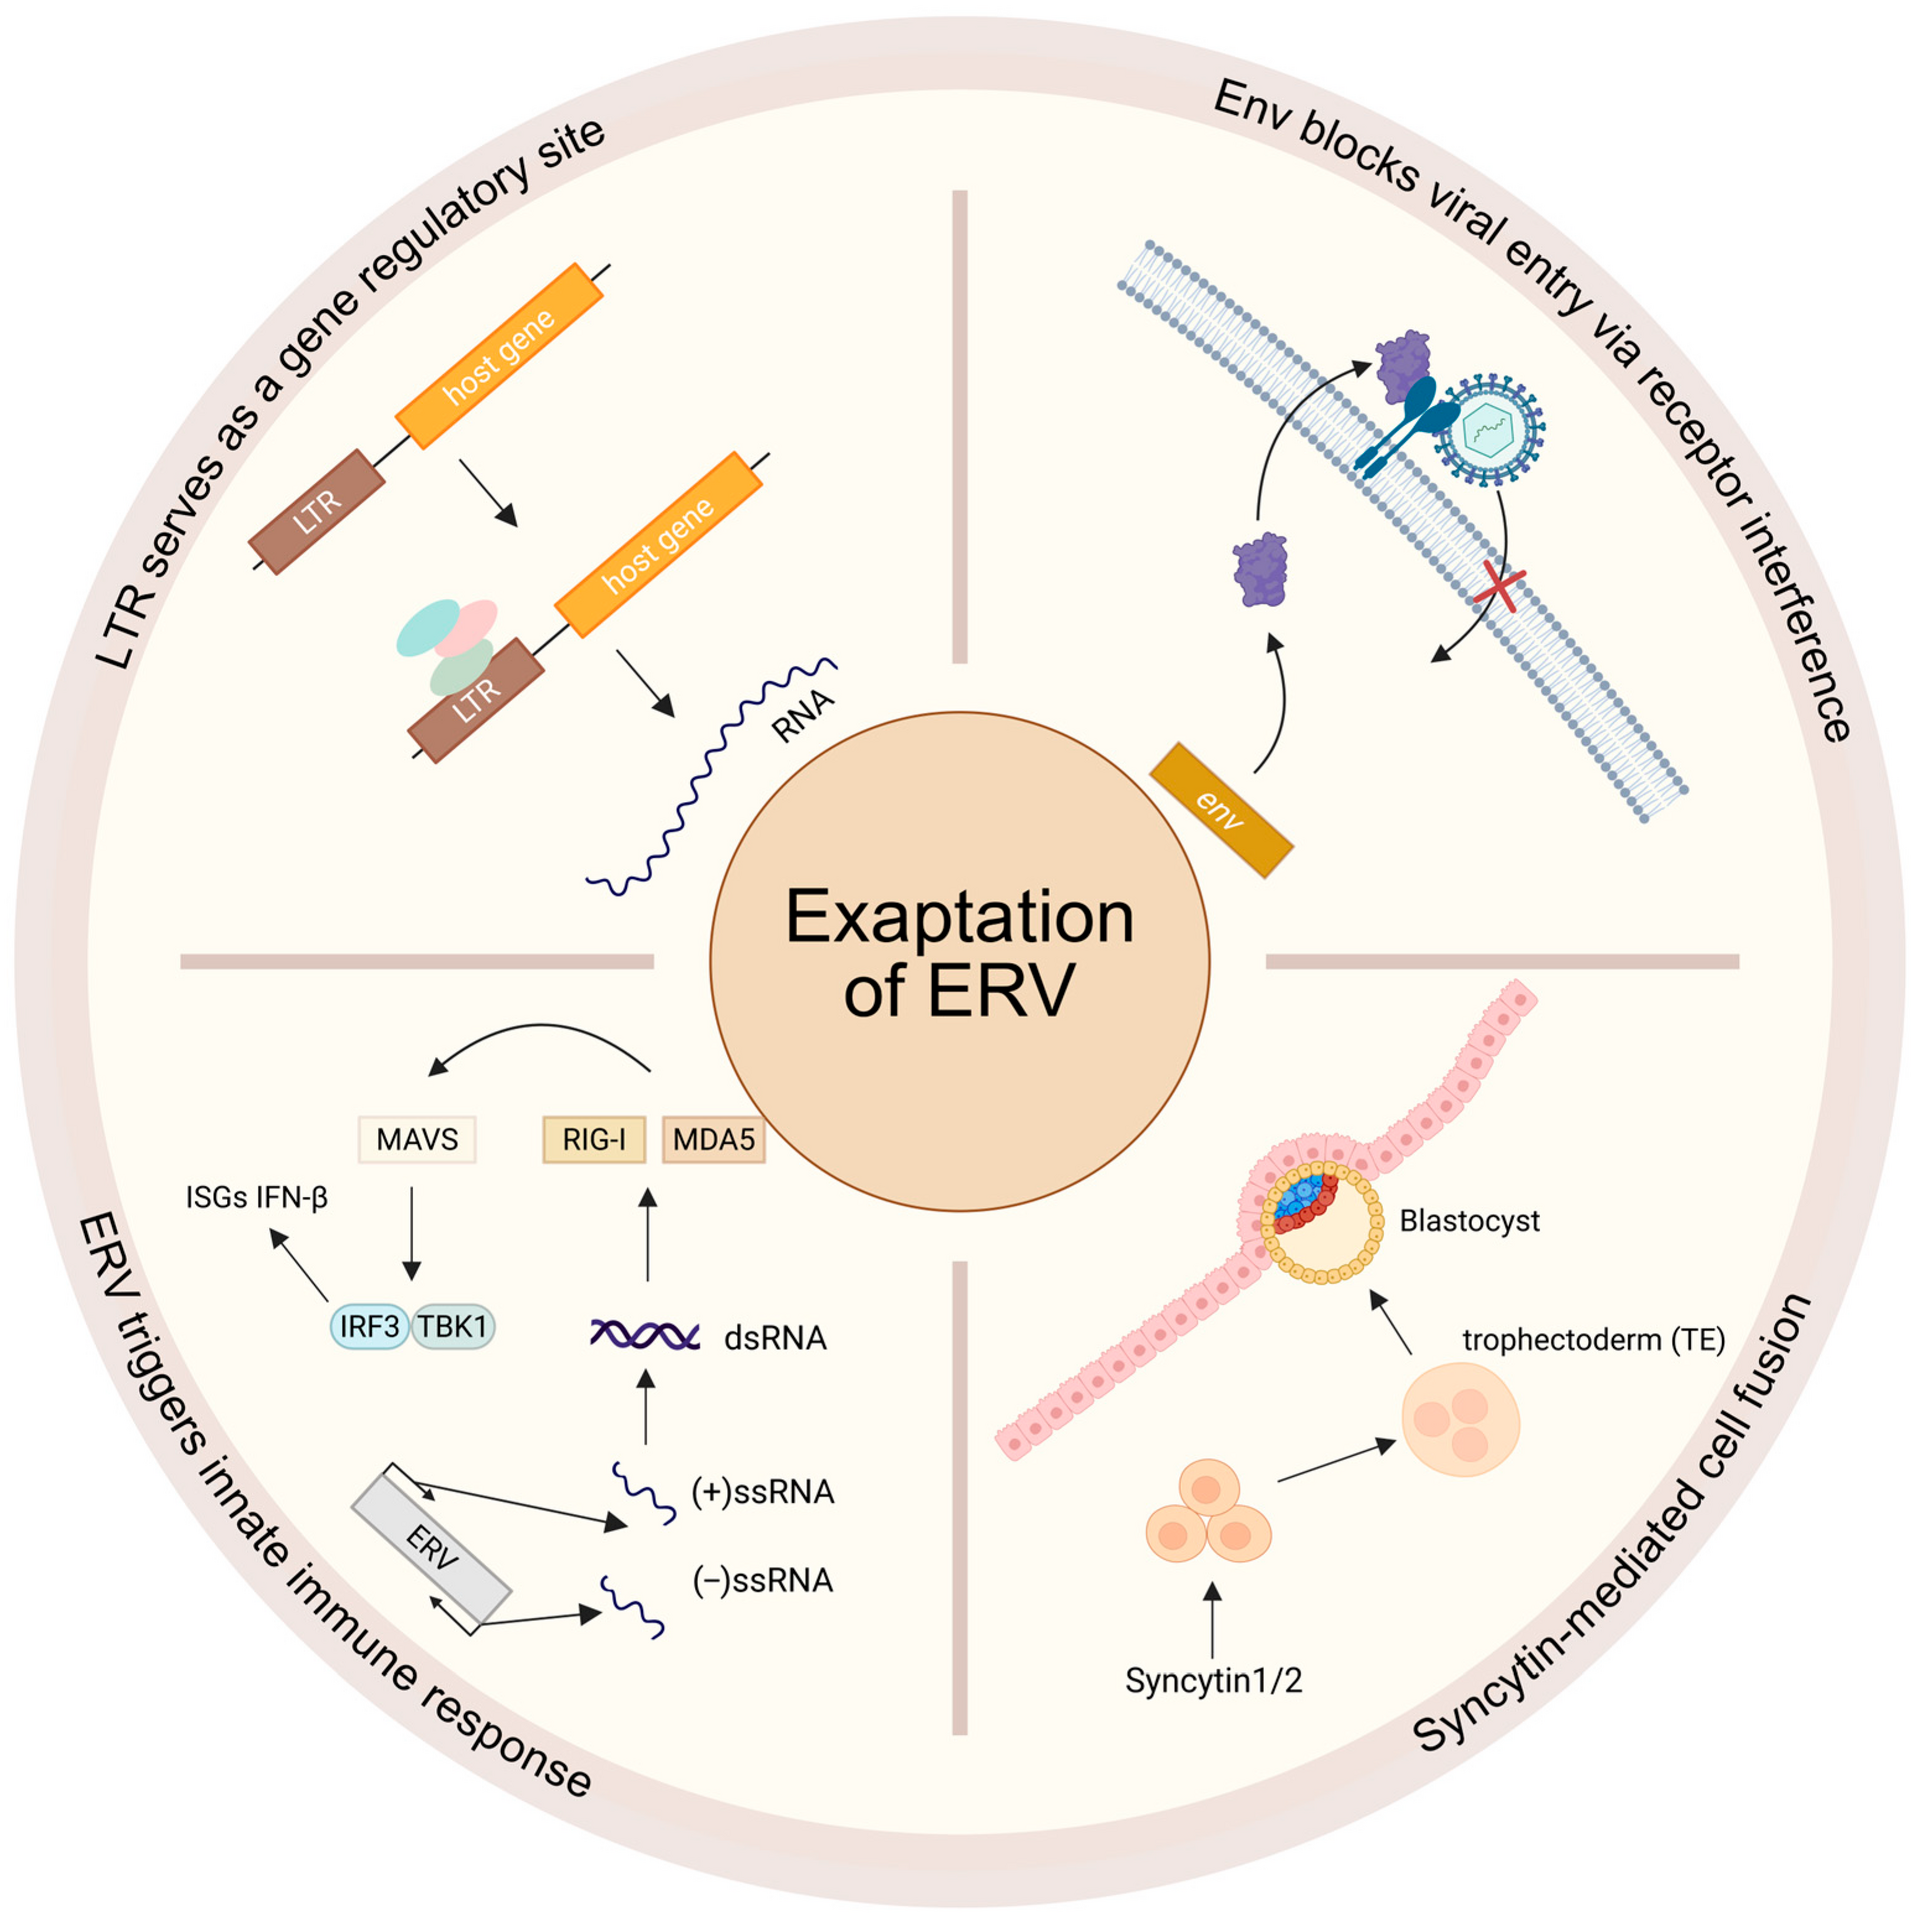
転用の地図
LTRのスイッチ、envによる融合や感染の妨害、ウイルスRNAが起こす免疫反応。宿主が使い道を見つけた経路は複数ある。
ジャンクと呼ばれた配列
動く遺伝子の発見から、胎盤の遺伝子の発見まで。
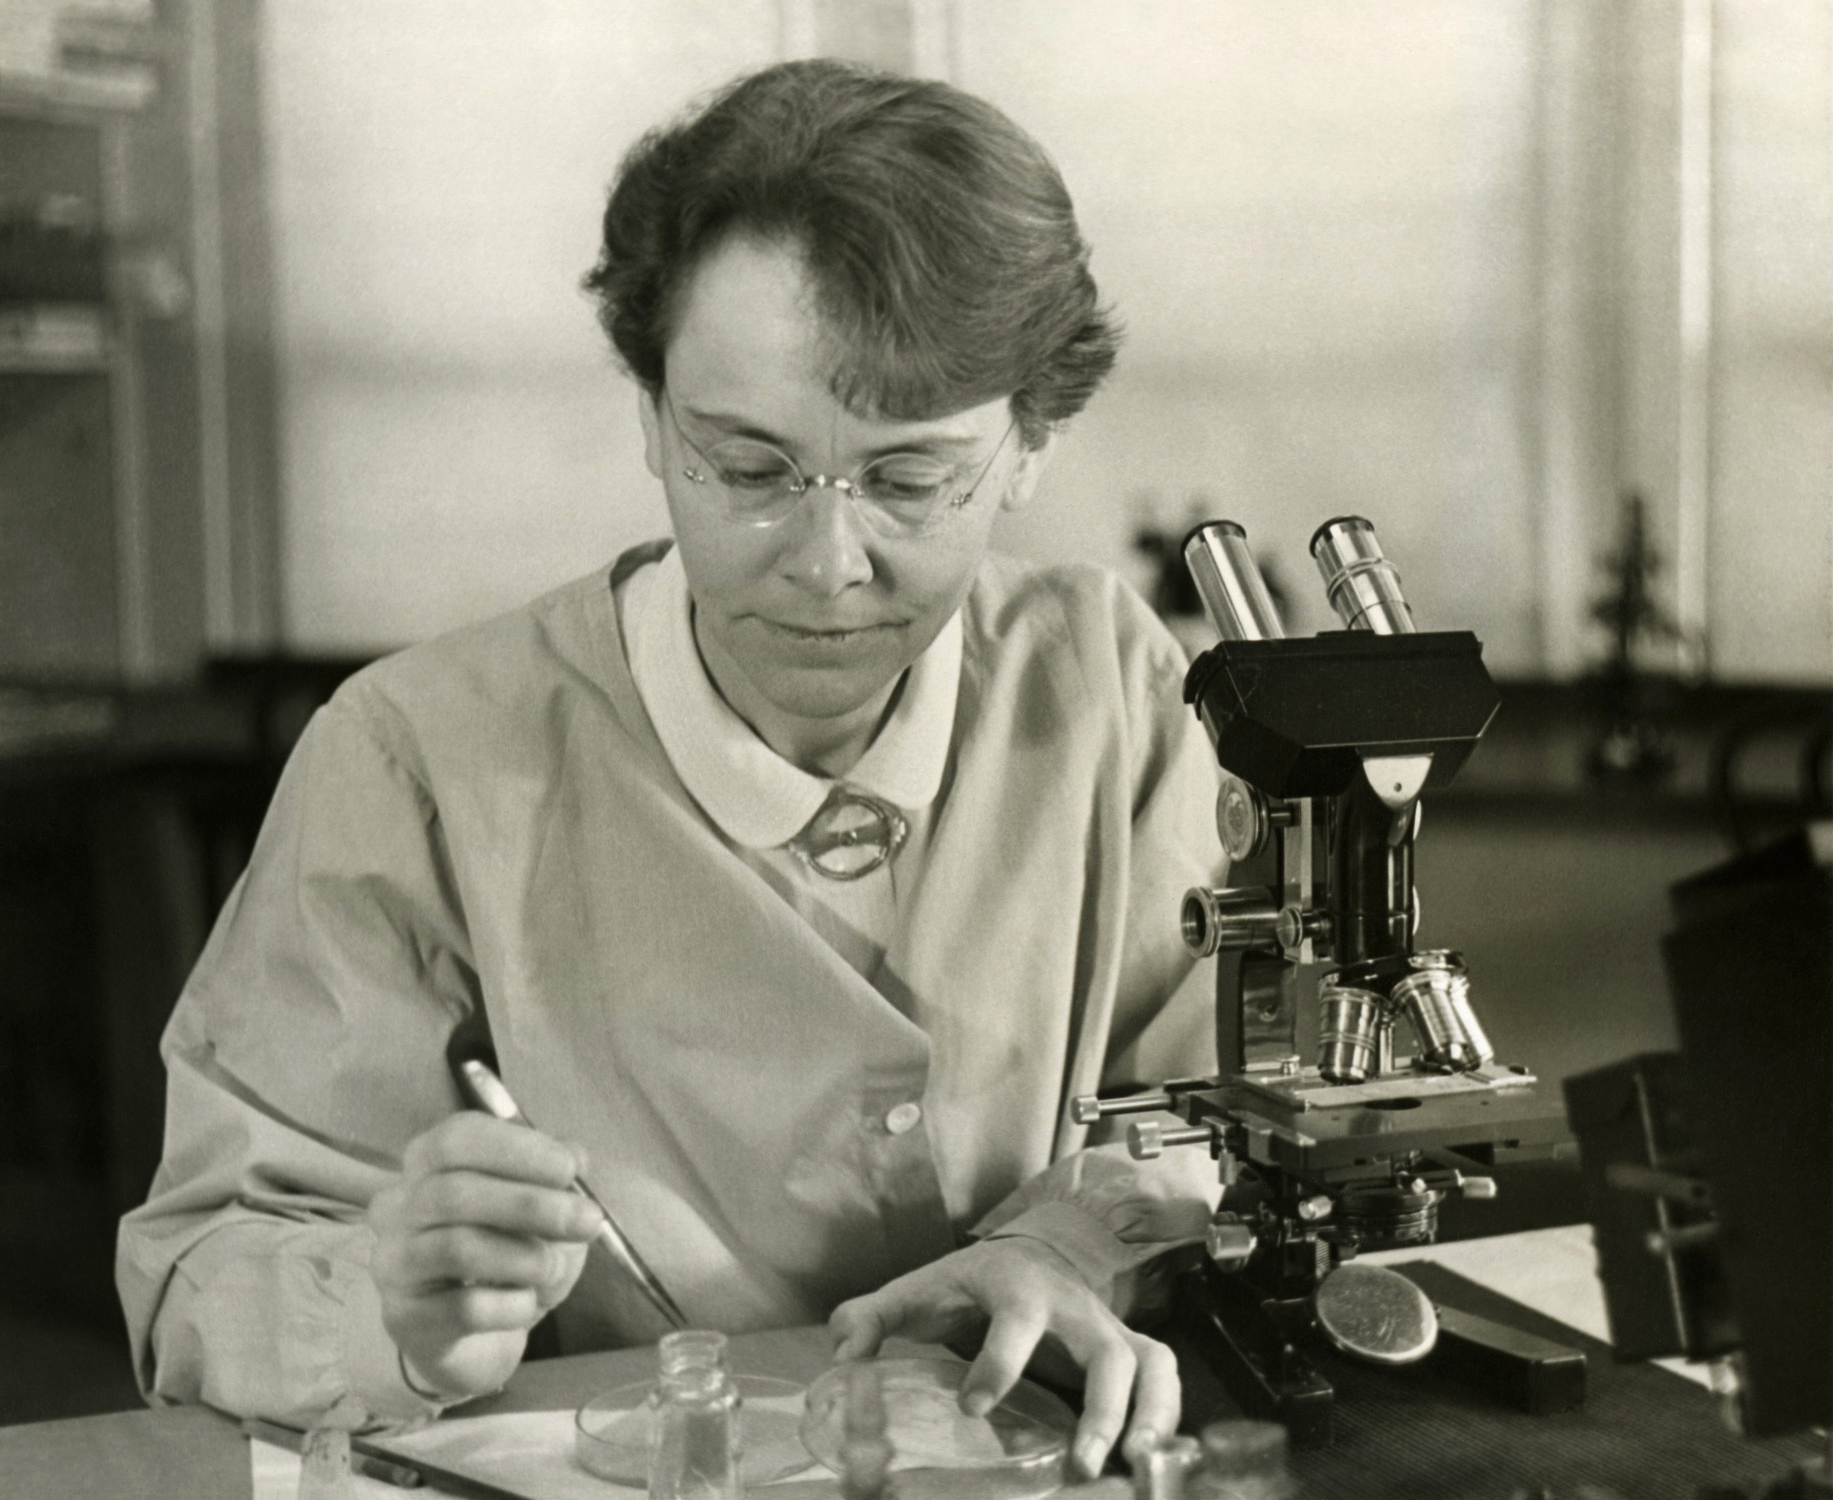
ゲノムの中を動く配列を最初に見つけたのは、トウモロコシを調べていた米国の遺伝学者バーバラ・マクリントックである。1940年代の発見から約40年後の1983年、「動く遺伝因子の発見」でノーベル生理学・医学賞を受けた。
2000年2月、米国のミ(Sha Mi)らは『ネイチャー』に、ヒトの内在性レトロウイルスHERV-Wのenv遺伝子が胎盤で強く働き、細胞を融合させることを報告した。論文はこれを「捕らえられたレトロウイルスの外被タンパク質」と呼び、シンシチンと名づけた。
2003年には、フランスのティエリー・ハイドマンらが、ヒトのゲノムからenv遺伝子を持つERVを探し出し、16の候補を一つずつ調べた。融合を起こしたのは既知のHERV-Wと、HERV-FRDという系統のもう一つだけだった。後者はシンシチン2と呼ばれ、新世界ザルからヒトまでのすべての真猿類が持っている。
死んだウイルスを組み立て直す
壊れたコピーを何十も並べると、元の姿が見えてくる。
読み方の候補
眠っているウイルスは、どこまで起こせるのか。
2006年、ハイドマンのチームは『ゲノム・リサーチ』に、HERV-Kという系統の祖先を復元した結果を発表した。ヒトにしかない完全長のコピーを並べ、各位置で最も多い文字を選んで祖先の配列を推定し、実際に合成した。できたウイルスは「フェニックス」と名づけられ、ヒトを含む哺乳類の培養細胞に感染した。ただし感染力はかなり低かった。
ゲノムの中のウイルスを数える
2016年、米国タフツ大学などのチームは、約2500人のゲノムを調べ、それまで知られていなかったHERV-Kの挿入を19か所見つけた。その一つ、X染色体上の挿入は約50人が持っており、ウイルスとして働けそうな完全な形をしていた。人によって持っていたり持っていなかったりする挿入は、まだ数え残しがある。
説の対決
なぜこれほど多くのウイルス配列が残ったのかについて、三つの見方を並べる。
害が小さかったから残った
大半の配列が壊れていて働かず、残っていても宿主に不利にならなかったこと
一部の配列が、胎盤や免疫の働きに欠かせない役割を持つこと
役に立ったから残された
シンシチンやMER41のように、宿主が使い道を見つけた配列が実際にあること
ほとんどの配列には、役割が見つかっていないこと
自分で増えたから多い
ERVはゲノムの中でコピーを増やせるため、感染の回数以上に数が増えうること
多くのコピーが今は壊れて増えられず、なぜ増殖が止まったのかは系統ごとに違うこと
編集部の考察
確認事実:ヒトゲノムの約8%はLTR型のレトロウイルス様配列である。その一部は胎盤の細胞融合や免疫遺伝子の調節に使われている。
推論材料:2001年のヒトゲノム解読論文、2000年と2003年のシンシチンの論文、2006年のフェニックス復元、2016年の免疫と挿入の調査。
考察:「ゴミ」か「宝」かの二択ではない。大半は痕跡として残り、そのごく一部を宿主が使うようになった、と読むのが実験結果に近い。
弱点・反証:働きが確認された配列は一部にすぎない。働きが見つかっていないことと、働きがないことは同じではない。
まだ解けていない問い
- 1
ウイルスの配列は、なぜ消されずにゲノムの8%も残ったのか
害が小さかったのか、役に立ったのか、自分で増えたのかは、系統ごとに事情が違う。一つの答えにまとめられていない。
- 2
壊れた配列のうち、どれだけが今も体の役に立っているのか
数万か所の配列を一つずつ削って確かめる実験は、まだごく一部しか行われていない。
- 3
眠っているウイルスが、病気に関わることはあるのか
病気との関連を示す報告はあるが、原因なのか結果なのかを区別できた例は限られている。
シンシチン2のもとになったウイルスの配列は、新世界ザルからヒトまで、同じ場所に残っている。
私たちが胎盤で子を育てる仕組みの一部は、祖先がかかった感染症の跡から作られた。
ゲノムの8%は、まだ誰も最後まで読んでいない記録である。
Calistemon / Wikimedia Commons / CC BY-SA 4.0原論文
- Lander ES et al. Initial sequencing and analysis of the human genome. Nature 409, 2001
- Mi S et al. Syncytin is a captive retroviral envelope protein involved in human placental morphogenesis. Nature 403, 2000
- Blaise S et al. Genomewide screening for fusogenic human endogenous retrovirus envelopes identifies syncytin 2. PNAS 100, 2003
- Dewannieux M et al. Identification of an infectious progenitor for the multiple-copy HERV-K human endogenous retroelements. Genome Research 16, 2006
- Chuong EB, Elde NC, Feschotte C. Regulatory evolution of innate immunity through co-option of endogenous retroviruses. Science 351, 2016
- Wildschutte JH et al. Discovery of unfixed endogenous retrovirus insertions in diverse human populations. PNAS, 2016
- Tarlinton RE, Meers J, Young PR. Retroviral invasion of the koala genome. Nature 442, 2006
- Dupressoir A et al. Syncytin-A and syncytin-B, two fusogenic placenta-specific murine envelope genes of retroviral origin. PNAS 102, 2005
解説・報道
写真・資料クレジット
CDC / C. Goldsmith ほか / Wikimedia Commons / パブリックドメイン。縮小(WordPress の縮小版を使用)。出典ページ(確認 2026-09-25)
Courtesy: National Human Genome Research Institute / Wikimedia Commons / パブリックドメイン。縮小(WordPress の縮小版を使用)。出典ページ(確認 2026-09-25)
Jiang R, Zhou J, Liu Y, Zhou G, Fan D, Xiang L, Chen Y, Shao J. / Wikimedia Commons / CC BY 4.0。縮小(WordPress の縮小版を使用)。出典ページ(確認 2026-09-25)
Garst, Warren, 1922-2016, photographer / Wikimedia Commons / CC BY-SA 4.0。縮小(WordPress の縮小版を使用)。出典ページ(確認 2026-09-25)
Courtesy of the Human Reference Atlas Rachel Bajema / Wikimedia Commons / CC BY 4.0。縮小(WordPress の縮小版を使用)。出典ページ(確認 2026-09-25)
Aris Katzourakis / Wikimedia Commons / CC BY 4.0。縮小(WordPress の縮小版を使用)。出典ページ(確認 2026-09-25)
Till Niermann / Wikimedia Commons / CC BY 3.0。縮小(WordPress の縮小版を使用)。出典ページ(確認 2026-09-25)
Jiang R, Zhou J, Liu Y, Zhou G, Fan D, Xiang L, Chen Y, Shao J. / Wikimedia Commons / CC BY 4.0。縮小(WordPress の縮小版を使用)。出典ページ(確認 2026-09-25)
Smithsonian Institution /Science Service; Restored by Adam Cuerden / Wikimedia Commons / パブリックドメイン。縮小(WordPress の縮小版を使用)。出典ページ(確認 2026-09-25)
Rod Waddington / Wikimedia Commons / CC BY-SA 2.0。縮小(WordPress の縮小版を使用)。出典ページ(確認 2026-09-25)
Calistemon / Wikimedia Commons / CC BY-SA 4.0。縮小(WordPress の縮小版を使用)。出典ページ(確認 2026-09-25)